内源性逆转录病毒(endogenous retrovirus, ERV;人类中常称 human endogenous retrovirus, HERV)是由古老逆转录病毒感染生殖系并固定于宿主基因组的病毒来源 retroelement。ERV 属于广义 retroelement / LTR retrotransposon 相关范畴,在人类基因组中多以失活 provirus、solo LTR 或残片形式存在;其重要性在于同时记录宿主-病毒共演化,并为宿主调控元件、RNA、蛋白和免疫信号提供潜在来源。ERV 不应与外源逆转录病毒、LINE-1、Alu 或所有转座元件简单等同。
概述
逆转录病毒的典型生命周期包括 RNA 病毒进入细胞、逆转录成 DNA、整合进宿主染色体、再由宿主转录系统产生病毒 RNA 和蛋白。若整合事件发生在生殖系细胞,且未被选择清除,该插入可随宿主世代遗传,则最终形成内源性逆转录病毒。 人类基因组中的 HERV 及其残片约占基因组的 8%,但绝大多数已经因突变、缺失、重组和表观遗传沉默而失去感染性。
ERV 的现代生物学意义主要来自两类事实。
- 第一,ERV/LTR 保留了病毒转录调控逻辑,例如启动子、增强子和 polyA 信号,因此可能被宿主驯化为调控元件。
- 第二,部分 ERV 在胚胎发育、胎盘形成、肿瘤去分化和表观遗传药物处理等场景中重新表达,可能产生非编码 RNA、嵌合转录本、残留蛋白或固有免疫信号。相同的表达现象在不同层级上代表的含义不同,不能把 family-level 表达升高直接解释为某个位点具有功能。
概念边界
| 概念 | 与 ERV 的关系 | 关键区别 |
|---|---|---|
| 外源逆转录病毒 | 来源相近 | 外源逆转录病毒主要通过水平感染传播;ERV 是进入生殖系后被垂直遗传的基因组序列。 |
| LTR retrotransposon | 上位或相邻概念 | ERV 属于 LTR retrotransposon 相关范畴,但许多注释中的 LTR 元素已是 solo LTR 或残片,不代表完整 provirus。 |
| LINE-1 / L1 | 同属广义 retroelement | LINE-1 是非 LTR retrotransposon,典型结构为 5'UTR-ORF1-ORF2-3'UTR,不具有 ERV 的 LTR-gag-pol-env 来源结构。 |
| Alu / SINE | 相邻 retroelement | Alu 是非自主 SINE,通常依赖 L1 机器移动,不编码完整转座机器。 |
| solo LTR | ERV 衰变产物 | solo LTR 通常由两端 LTR 同源重组后删除内部编码区形成,可保留调控功能但通常不代表完整病毒。 |
| 一般转座元件 | 上位概念 | 转座元件包括 DNA transposon、LINE、SINE、LTR/ERV 等多类机制不同的重复序列。 |
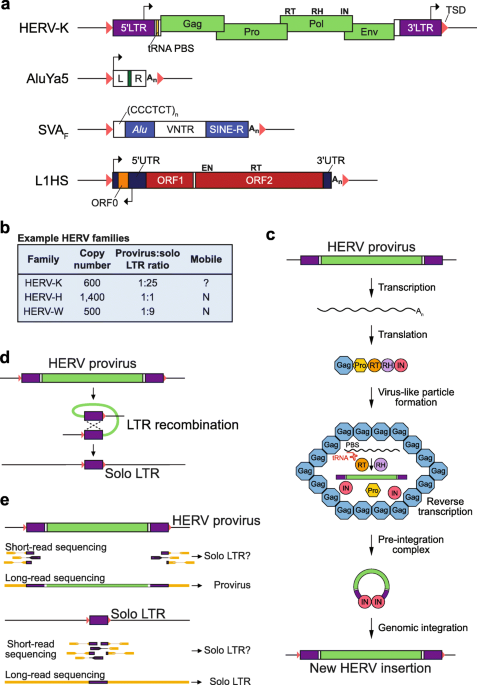
结构与分类
完整 ERV 前病毒的典型结构可表示为:
5' LTR - gag - pro/pol - env - 3' LTR
| 元件 | 原始病毒功能 | 宿主基因组中的常见命运 |
|---|---|---|
| 5' / 3' LTR | 调控病毒转录起始、增强、终止和 polyA | 可被驯化为启动子、增强子、绝缘子样元件或非编码 RNA 起点。 |
| gag | 病毒核心结构蛋白 | 多数失活;少数 gag-like 序列可能被宿主功能驯化。 |
| pro/pol | 蛋白酶、逆转录酶、整合酶等复制相关蛋白 | 多数因突变失活;pol 片段常用于分类和进化分析。 |
| env | 包膜与细胞融合相关蛋白 | 多数失活;少数 env 被宿主利用,例如胎盘 syncytin。 |
HERV(人内源性逆转录病毒序列)可按序列相似性、整合年代和系统发育关系划分为不同 group、family 与 subfamily。 常见研究对象并不一定是完整 provirus,可能只是某个 LTR 子家族、一个 solo LTR、一个位点级插入、一个重复序列来源 RNA,或一个残留蛋白。
机制
形成与基因组固定
ERV 的形成需要三个条件:逆转录病毒感染可遗传的生殖系细胞,病毒 DNA 整合进入宿主染色体,携带该插入的个体能够繁殖并把插入传给后代。随后,插入位点会经历自然选择、遗传漂变、突变积累和重组删除。有害插入更容易被清除,中性或被宿主利用的插入可能保留。今天观察到的 HERV 是这些长期筛选过程之后的残留集合。
表观遗传沉默
宿主通常通过 DNA 甲基化、H3K9me3 相关异染色质、KRAB-ZFP/KAP1 轴、小 RNA 和 RNA 降解机制抑制 ERV。沉默的主要目的包括避免异常转录启动、降低重复序列重组风险、减少 dsRNA 样免疫信号和限制异常抗原暴露。胚胎早期、配子发生、肿瘤去分化和表观遗传药物处理会改变这些沉默层级,使部分 ERV/LTR 重新获得转录活性。
调控元件驯化
LTR 天然携带启动子和增强子逻辑,因此容易被宿主调控网络利用。一个 LTR 插入到基因附近后,可能提供新的转录起始位点、组织特异增强子、转录因子结合位点或 polyA 信号。若这种插入被长期保留并整合进发育或免疫调控网络,可视为 co-option / exaptation。该机制既可发生在正常演化中,也可在肿瘤中以异常 LTR promoter 或 enhancer 的形式出现。
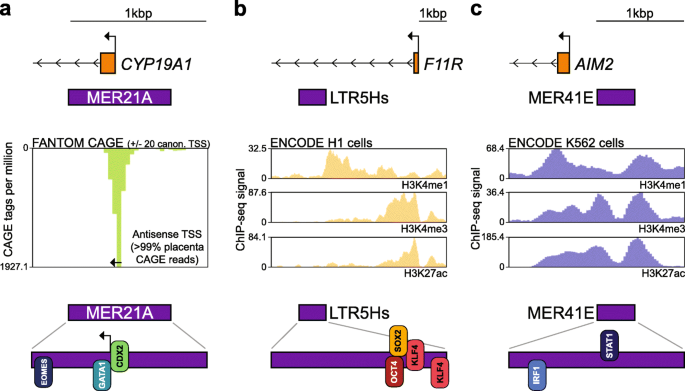
RNA 与蛋白功能
ERV 可产生非编码 RNA、反义 RNA、嵌合转录本或 dsRNA 样分子。RNA 层面的功能需要结合长读长测序、位点级注释、RNA 定位、RNA-蛋白互作和功能扰动判断。蛋白层面最经典的生理例子是 syncytin,源自 HERV env 类基因,并参与胎盘滋养层细胞融合。肿瘤和自身免疫研究中还需区分 ERV RNA、ERV-derived peptide、抗原呈递和下游免疫通路,避免把不同层级的证据合并解释。
生理意义
ERV 的生理意义主要体现在发育和免疫调控两个方向。胎盘形成中的 syncytin(合胞素) 是 ERV env 被宿主功能驯化的代表性例子,说明病毒来源蛋白可在宿主演化中转化为正常发育模块。早期胚胎中,多种 retro-TE/ERV 子家族会在特定阶段表达,可能提供启动子、增强子、非编码 RNA 或染色质调控平台。
疾病相关性
ERV 与疾病的关系主要来自三类机制:调控失控、异常免疫识别和残留蛋白功能。肿瘤中 HERV/LTR 再激活常见于 DNA 甲基化下降、异染色质松弛、去分化状态、染色质重塑异常或药物干预后。其后果可能包括异常启动子或增强子激活、胚胎样程序表达、双链 RNA 样 viral mimicry、I 型/III 型干扰素反应、抗原呈递增强,或少数残留蛋白参与细胞融合和信号转导。
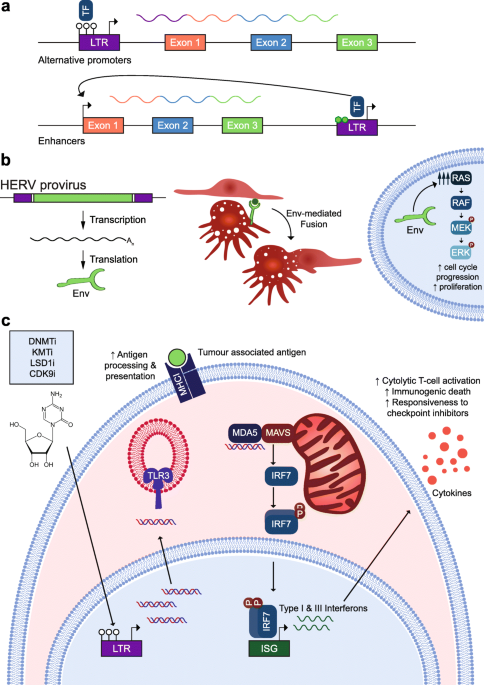
肿瘤相关 ERV 信号需要谨慎解释。Bulk RNA-seq 中观察到 HERV family 表达升高,只能证明重复序列表达状态改变;若要主张某个位点驱动肿瘤,需要位点级表达、染色质证据、蛋白或抗原证据,以及敲低、敲除、救援或药物扰动等因果证据。ERV-induced viral mimicry 与 cGAS-STING 信号通路、肿瘤免疫编辑 和 免疫检查点治疗 相关,但不同癌种、不同药物和不同 ERV 子家族之间的证据强度差异较大。
研究相关内容
研究方法
| 分析层级 | 常见数据或证据 | 主要解释限制 |
|---|---|---|
| family / subfamily | repeat-aware RNA-seq、TE quantification、差异表达 | 容易受 multi-mapping reads 和注释版本影响,不能直接推出单个位点功能。 |
| locus / copy | 位点级比对、长读长测序、ChIP/ATAC peak、CRISPR 扰动 | 重复序列同源性高,短读长数据难以可靠定位。 |
| transcript | Nanopore/PacBio、RACE、ChIRP、RNA FISH | 需要区分 promoter readthrough、剪接融合和真实功能性 RNA。 |
| protein | ORF 预测、蛋白质组、抗体染色、功能结构域 | 多数 HERV ORF 已失活,抗体特异性和同源序列干扰需要验证。 |
| antigen | MHC ligandome、TCR 识别、免疫肽段验证 | RNA 表达不等于抗原呈递,抗原性也不等于有效抗肿瘤免疫。 |
| pathway | IFN signature、MDA5/MAVS、TLR3、cGAS-STING、药物扰动 | 干扰素激活可能来自多种核酸来源,不能默认归因于 ERV。 |
| phenotype | 胚胎发育、细胞状态、肿瘤增殖、免疫治疗反应 | 需要扰动和 rescue 支持,相关性结果不能直接解释为因果机制。 |
对 ERV 研究而言,高质量证据通常需要跨层级闭环:先定义具体子家族或位点,再证明其转录本或蛋白存在,随后定位作用位置或互作对象,最后通过功能扰动和救援实验确认因果关系。Xiang 等 2026 年研究的证据强度主要来自长读长定义 RNA 结构、ChIRP-seq 定位、RNA pull-down/MS 识别 HNRNPU、RNAP II 相关实验和 ASO/rescue 功能扰动的组合。
代表性文献
| 文献 | 研究对象 | 核心发现 | 证据类型 | 局限 |
|---|---|---|---|---|
| Cloyd, NCBI Bookshelf | 人类逆转录病毒基础概念 | 区分外源逆转录病毒与内源性逆转录病毒,说明逆转录和整合是核心生命周期。 | 教材型定义来源 | 内容偏基础,不能覆盖最新组学和肿瘤机制。 |
| Blomberg 等, NCBI Bookshelf | HERV 演化 | 生殖系感染、垂直遗传和长期演化解释了 HERV 的来源。 | 教材/综述型来源 | 侧重演化背景,机制实验细节有限。 |
| Grandi and Tramontano, 2018 | HERV 与固有免疫 | HERV 是古老获得性元素,仍可影响免疫调控和宿主防御网络。 | 综述 | 不针对单一癌种或单一 ERV 子家族。 |
| Jansz and Faulkner, 2021 | ERV 与肿瘤起源和治疗 | 系统总结 ERV 在肿瘤中的调控元件驯化、viral mimicry、抗原和治疗相关性。 | 高质量综述 | 不同癌种机制差异较大,许多模型仍需原始研究验证。 |
| Xiang 等, 2026 | 人类 8C/ZGA、MLT2A1 | MLT2A1 产生异源嵌合 RNA,通过 HNRNPU/RNAP II 机制增强 ZGA 基因转录。 | 原始研究;长读长、ChIRP、互作和扰动证据 | 主要限于人类早期胚胎和 8C-like 细胞,不能直接推论到肿瘤或所有 ERV。 |
| Zhang 等, 2026 | LUAD 中 LINE-1 | LINE-1/ID2 轴提示非 LTR retroelement 可参与肿瘤基因组演化,是 ERV 边界对照案例。 | 原始研究;WGS、多组学和验证队列 | 研究对象是 LINE-1,不是 ERV;用于概念区分和方法参照。 |
研究相关内容
Xiang 等 2026 年发表于 Science 的研究将人类 8C/ZGA 阶段的 MLT2A1 LTR/ERVL 子家族放入这一框架。该研究显示,MLT2A1 可产生多样化 heterologous chimeric RNAs;这些 RNA 通过共同的 5' MLT2A1 模块结合 HNRNPU,并通过多样 3' 融合序列扩展基因组靶向范围,进而促进 RNAP II 招募和 ZGA 基因转录。该发现支持“特定 ERV 子家族可作为发育调控 RNA 网络”的模型,但其结论目前主要限于 MLT2A1、人类早期胚胎和 8C-like 细胞系统,不能外推为所有 ERV 均具有相同功能。
相关条目
- 肿瘤进化与异质性
- 突变特征_Mutational_Signature
- 肿瘤免疫编辑
- 免疫检查点治疗
- cGAS-STING 信号通路
- Xiang2026-ERV嵌合RNA增强人早期胚胎发育
- Zhang等-2026-LINE-1-LUAD
参考来源
- Cloyd MW. Human Retroviruses. In: Medical Microbiology. NCBI Bookshelf. https://www.ncbi.nlm.nih.gov/books/NBK7934/
- Blomberg J, et al. Evolutionary Aspects of Human Endogenous Retroviral Sequences (HERVs) and Disease. NCBI Bookshelf. https://www.ncbi.nlm.nih.gov/books/NBK6235/
- Grandi N, Tramontano E. Human Endogenous Retroviruses Are Ancient Acquired Elements Still Shaping Innate Immune Responses. Front Immunol. 2018. https://www.frontiersin.org/journals/immunology/articles/10.3389/fimmu.2018.02039/full
- Jansz N, Faulkner GJ. Endogenous retroviruses in the origins and treatment of cancer. Genome Biol. 2021. https://link.springer.com/article/10.1186/s13059-021-02357-4 (图 1-3 来源;CC BY 4.0)
- Xiang Y, et al. Endogenous retroviruses synthesize heterologous chimeric RNAs to reinforce human early embryo development. Science. 2026. DOI: 10.1126/science.adv5257.
- Xiang2026-ERV嵌合RNA增强人早期胚胎发育
- Zhang等-2026-LINE-1-LUAD
内源性逆转录病毒(ERV)
本文采用 CC BY-NC-SA 4.0 许可协议,转载请注明出处。
评论交流
欢迎留下你的想法